Le cellule osteoprogenitrici si collocano sulle superfici libere delle ossa: le si riconoscono a livello dello strato più interno del periostio apposto all’osso, il cosiddetto strato osteogenico di Ollier, riccamente vascolarizzato. Tali cellule sono altresì localizzate a livello del tessuto connettivo lasso che riveste le cavità interne dell’osso, il cosiddetto endostio, in vicinanza dei capillari sanguigni. Le cellule osteoprogenitrici sono dotate di capacità proliferativa, che si manifesta in modo particolare durante l’accrescimento corporeo ma che può esplicarsi anche durante la vita adulta. L’osteoblasto è la sede di sintesi delle molecole organiche della sostanza intercellulare dell’osso, le quali vengono successivamente esocitate ed assemblate all’esterno della cellula. L’osteoblasto presiede anche alla mineralizzazione della sostanza intercellulare, secondo modalità che non sono del tutto chiarite.
Nel tessuto osseo che viene deposto per primo, il cosiddetto osso fibroso, si ritiene che giochino un ruolo chiave i globuli calcificanti. Questi verrebbero estrusi dalla cellula per gemmazione, pertanto li si ritroverebbero nella matrice ossea in via di mineralizzazione sotto forma di vescicole della matrice, caratteristicamente provviste di un involucro membranoso. Sembra che l’iniziale deposizione di minerale avvenga proprio a ridosso della membrana interna di queste vescicole, le cui componenti agirebbero da catalizzatori per tale processo. Quando poi la membrana si disgrega, tali molecole si disperderebbero nella sostanza intercellulare dove tuttavia manterrebbero questa loro proprietà. Non è ben compreso se un ulteriore ruolo nel processo di mineralizzazione sia svolto dalle sostanze contenute nelle vescicole della matrice che si liberano quando queste si disgregano. Si ritiene verosimile che i precipitati di minerale fungano da centri di nucleazione dei cristalli di apatite. Altrettanto oscuro è il possibile ruolo svolto dalla pirofosfatasi: secondo alcuni ricercatori anch’essa potrebbe attivarsi liberando gruppi pirofosfato da particolari molecole, denominate difosfonati, ed inattivandole. Quando vengano scissi dalla pirofosfatasi osteoblastica, i difosfonati perdono affinità per i cristalli di apatite consentendo così la crescita dei cristalli stessi.
Nel tessuto osseo che viene deposto successivamente all’osso fibroso e che lo rimpiazza, il cosiddetto osso lamellare, le vescicole della matrice sono invece virtualmente assenti. Si ritiene che, in questa sede, il processo di mineralizzazione sia avviato da componenti delle fibre collagene e/o da molecole della sostanza fondamentale anista associati alle fibre collagene. In entrambi i casi, alla regolazione della mineralizzazione della matrice ossea contribuirebbero inoltre altre molecole prodotte dagli osteoblasti, tra le quali vanno ricordate l’osteonectina, che favorisce la nucleazione dei cristalli minerali, e la osteocalcina, che agirebbe invece da inibitore della precipitazione di fosfato di calcio. La produzione della matrice ossea e la sua mineralizzazione avvengono secondo un orientamento ben preciso: inizialmente l’osteoblasto depone osso dal lato rivolto verso la superficie ossea preesistente; successivamente ne depone da ogni lato tutto attorno a sé, di modo che ciascuna cellula si allontana progressivamente dalle circostanti a causa dell’interposizione di sostanza intercellulare. A questo punto l’osteoblasto rallenta sostanzialmente la sua attività metabolica e si trasforma in un osteocita, mentre nuovi osteoblasti si differenziano via via dalle cellule osteoprogenitrici. Gli osteoblasti producono e secernono fattori solubili, il più studiato dei quali è il fattore di crescita trasformante (trasforming growth factor)-ß (TGF-ß) che è un potente stimolatore degli osteoblasti stessi. Esso fa parte della stessa famiglia a cui appartengono le BMP; agendo in maniera paracrina ed autocrina, è capace di modulare la proliferazione delle cellule osteoprogenitrici, di promuovere il loro differenziamento in osteoblasti e di incrementare il metabolismo e le sintesi macromolecolari degli osteoblasti maturi. Il TGF-ß viene secreto in forma di precursore inattivo, il quale viene convertito nella forma attiva ad opera di proteasi presenti nell’ambiente extracellulare. Gli osteoblasti sono coinvolti nei processi di rimaneggiamento dell’osso. Infatti, queste cellule sono in grado di innescare il riassorbimento della matrice ossea sia indirettamente, in quanto producono fattori solubili che attivano gli osteoclasti, le cellule preposte al riassorbimento osseo, sia direttamente, in quanto secernono enzimi proteolitici capaci di scindere i componenti della matrice organica dell’osso. Tra questi enzimi vi è la collagenasi, che viene secreta sotto forma di procollagenasi inattiva. La sua attivazione avviene nell’ambiente extracellulare ad opera di un’altra proteasi, l’attivatore tissutale del plasminogeno (tPA), anch’esso prodotto dagli stessi osteoblasti. Il tPA attiva una proteasi ad ampio spettro, la plasmina, presente nel plasma sanguigno come precursore inattivo, detto plasminogeno. La plasmina opera il clivaggio proteolitico della procollagenasi trasformandola nella collagenasi attiva.
Gli osteociti sono le cellule tipiche dell’osso maturo, responsabili del suo mantenimento ed anche capaci di avviarne il rimaneggiamento. Sono cellule terminali, con una autonomia di vita finita, finemente regolata da meccanismi endocrini. Il corpo dell’osteocita rimane racchiuso in una nicchia scavata nella sostanza intercellulare ossea, detta lacuna ossea, la cui forma ricalca quella della cellula, mentre i prolungamenti sono accolti all’interno di sottili canali scavati nel tessuto osseo e definiti canalicoli ossei. Alle loro estremità, i prolungamenti di un osteocita sono connessi mediante giunzioni serrate con quelli degli osteociti circostanti. Tra la membrana plasmatica del corpo cellulare e dei prolungamenti e la matrice mineralizzata rimane uno spazio sottile occupato da tessuto osteoide che non mineralizza. Attraverso il tessuto osteoide delle lacune e dei canalicoli ossei, che sono ampiamente comunicanti, l’acqua e le sostanze disciolte (gas respiratori e metaboliti) riescono a raggiungere tutti gli osteociti, anche quelli più distanti dai vasi sanguigni. Quando l’osteocita giunge at termine del suo ciclo vitale, esso ritrae i propri prolungamenti e degenera. Per molto tempo si è ritenuto che la morte degli osteociti fosse alla base del cosiddetto minirimaneggiamento, che avviene a livello di singoli osteociti e che nel suo insieme era ritenuto essere coinvolto nel mantenimento dei livelli circolanti di ione calcio (calcemia). Dagli osteociti morti si sarebbero infatti liberati nella lacuna acidi organici derivati dal metabolismo cellulare (es. acido lattico) ed enzimi lisosomiali: i primi avrebbero disciolto i cristalli di apatite ed i secondi avrebbero scisso le macromolecole organiche della sostanza intercellulare, operando la cosiddetta osteolisi osteocitica. Si riteneva altresì che l’osteolisi osteocitica fosse promossa dal paratormone (PTH), l’ormone ipercalcemizzante prodotto dalle paratiroidi, il quale interagendo con recettori posti sulla membrana degli osteociti avrebbe determinato un abbreviazione del loro ciclo vitale. In epoca recente, tuttavia, il ruolo dell’osteolisi osteocitica è stato ridimensionato: la mobilizzazione di ioni calcio dalla matrice ossea stimolata dal paratormone è ritenuta dipendere principalmente dall’azione combinata di osteoblasti ed osteoclasti.
Gli osteoclasti sono le cellule preposte al riassorbimento osseo. Come già accennato, essi non sono cellule autoctone del tessuto osseo, in quanto non appartengono alla linea che deriva dalle cellule osteoprogenitrici. I precursori degli osteoclasti, detti preosteoclasti, originano nel midollo osseo ematopoietico e sono apparentati con la linea differenziativa di una categoria di globuli bianchi, i monociti. I preosteoclasti vengono trasportati dal torrente circolatorio fino alle sedi in cui debbono avvenire processi di riassorbimento osseo; qui giunti, essi migrano nel tessuto osseo e si fondono insieme originando gli osteoclasti attivi, elementi sinciziali capaci di dissolvere la componente minerale e di digerire enzimaticamente le componenti organiche del tessuto osseo. Il citoplasma è acidofilo. L’osteoclasto attivato è aderente alla matrice mineralizzata in via di riassorbimento ed è solitamente accolto in una cavità, detta lacuna di Howship, che si forma a seguito dell’azione erosiva della cellula sull’osso. Sul versante della cellula che si appone all’osso è visibile il cosiddetto orletto increspato, che appare come un’ispessimento della superficie cellulare con una sottile striatura disposta perpendicolarmente alla superficie stessa. Con metodi istochimici, a livello dell’orletto increspato si può rivelare la presenza dell’enzima anidrasi carbonica e di pompe a protoni. Il riassorbimento della matrice ossea inizia con la dissoluzione della componente minerale dovuta all’acidificazione del microambiente della zona sigillata. A questo livello l’anidrasi carbonica, sita sul versante ialoplasmatico del plasmalemma dell’orletto increspato, genera acido carbonico a partire da CO2 e H2O; le pompe di membrana localizzate sul plasmalemma dell’orletto increspato trasportano attivamente protoni, derivati dalla dissociazione dell’acido carbonico e di altri acidi organici di origine metabolica (es. acido citrico, acido lattico), nell’ambiente extracellulare. L’abbassamento del pH che ne consegue porta alla dissoluzione dei cristalli di apatite. Nel contempo, l’osteoclasto esocita il contenuto degli enzimi lisosomiali all’esterno: a basso pH le idrolasi lisosomiali si attivano e digeriscono i componenti organici della matrice ossea. Inoltre, l’osteoclasto libera l’attivatore tissutale del plasminogeno, il quale a sua volta attiva la plasmina e, per suo tramite, la collagenasi latente prodotta dagli osteoblasti. Quest’ultimo enzima contribuisce con la sua azione litica alla digestione della sostanza intercellulare organica dell’osso. L’azione erosiva dell’osteoclasto si manifesta con la formazione della lacuna di Howship. Una volta formata una prima lacuna, l’osteoclasto si distacca dalla matrice ossea, si muove per moto ameboide su una porzione di osso adiacente a quella appena riassorbita, aderisce nuovamente e forma una nuova lacuna. Procedendo un pò come una russapa che compie uno sterro, l’osteoclasto procede lungo l’osso scavandovi solchi profondi. La funzione osteoclastica è finemente regolata da fattori ormonali e locali. In particolare, gli osteoclasti sono le uniche cellule dell’osso che possiedono i recettori per l’ormone calcitonina, prodotto dalle cellule parafollicolari (o cellule C) della tiroide, con azione antagonista al paratormone. La calcitonina è un inibitore del riassorbimento dell’osso, essendo capace di indurre il distacco degli osteoclasti dall’osso, la scomparsa dell’orletto increspato e la riduzione del metabolismo cellulare. Il recettore per la calcitonina è già espresso dai precursori circolanti degli osteoclasti, e la sua evidenziazione può essere un valido metodo per la identificazione di queste cellule. Per contro, gli osteoclasti non esprimono il recettore per il paratormone, che non ha alcun effetto diretto su di essi. L’azione osteolitica del paratormone sembra esplicarsi per il tramite degli osteoblasti: questi, sotto stimolo dell’ormone, libererebbero fattori solubili detti OAF (osteoclast activating factors), che agirebbero sugli osteoclasti attivandoli e promuovendo così il riassorbimento osseo. La natura chimica degli OAF non è nota: probabilmente alcuni di questi fanno parte della categoria delle BMP (as es. la BMP-2 è un potente stimolatore del differenziamento osteoclastico in vitro).
La matrice organica dell’osso è rappresentata da fibre collagene (con la caratteristica periodicità assile di 68-70 nm al microscopio elettronico) incluse in una sostanza amorfa costituita da proteoglicani e da glicoproteine. Dal punto di vista qualitativo è simile a quella del tessuto cartilagineo, ma le differenze si notano dal punto di vista quantitativo: la concentrazione di proteoglicani è molto bassa di modo che il collagene (di tipo I) diventa prevalente rispetto agli altri costituenti. La matrice ossea è acidofila ed Alcian blu-negativa mentre quella cartilagine è fortemente basofila, metacromatica ed Alcian blu-positiva. L’osso si colora inoltre con la reazione PAS per i polisaccaridi, per il suo contenuto in glicoproteine. Con la miscela ematossilina-eosina l’osso si colora in rosso mentre la cartilagine rimane incolore. Nei preparati non decalcificati le fibre collagene sono mascherate dall’abbondante matrice minerale che ha lo stesso indice di rifrazione ed appaiono come una massa omogenea acidofila. I sali inorganici sono disposti ordinatamente tra i fascetti di fibre collagene, attorno alle singole fibrille ed anche all’interno delle fibrille tra le microfibrille. Dopo asportazione dei Sali di calciosi può rilevare che i fasci di fibrille sono disposti in maniera ordinata parallelamente tra loro in ciascuna lamella. I fasci collageni decorrono ad elica rispetto all’asse dell’osteone in ciascuna lamella, ma il passo dell’elica (cioè l’osteone) e la direzione delle fibre variano secondo angoli molto diversi nelle lamelle contigue. In conclusione, nell’osteone si alternano lamelle le cui fibre hanno un andamento destrorso ed una particolare inclinazione e lamelle aventi fibre con direzione sinistrorsa ed inclinazione diversa. Questo comportamento è la ragione del fatto che nelle sezioni trasversali dei sistemi di Havers si alternano spesso lamelle striate e lamelle punteggiate. Nelle prime le fibre decorrono più o meno parallelamente al piano della sezione e sono tagliate longitudinalmente; nelle lamelle punteggiate le fibrille sono disposte perpendicolarmente od obliquamente al piano della sezione e sono sezionate trasversalmente al loro asse maggiore. Siccome le fibrille collagene sono birifrangenti, se sezioni trasversali di osteoni sono osservate con il microscopio a luce polarizzata, si osservano lamelle luminose e lamelle oscure. Oltre le fibre lamellari, negli strati esterni dell’osso si osservano i grossi fasci di fibre perforanti di Sharpey provenienti dal periostio. La matrice organica dell’osso contiene, oltre al collagene di tipo I, anche varie classi di macromolecole: proteoglicani, glicoproteine, proteine della matrice contenenti GLA, osteonectina, fosfatasi alcalina, fibronectina, sialoproteine. La proteina osteocalcina ha alta affinità per l’idrossiapatite e potrebbe agire come inibitore della mineralizzazione in alcune condizioni. Le proteine GLA della matrice non hanno ruoli pienamente chiariti ma includono osteocalcina e altre proteine di matrice. L’osso è quindi un tessuto dinamico e plastico, con una componente organica e una componente inorganica ben definite in proporzioni: 35% peso secco organico e 65% peso secco inorganico. Le lamelle ossee sono organizzate in osteoni o sistemi non concentrici; gli osteoblasti sono alla base della produzione di nuova matrice, gli osteociti partecipano all’omeostasi del calcio e gli osteclasti riassorbono la matrice ossea. Il tessuto osseo compatto presenta una tipica struttura lamellare con canali di Havers al centro e una densità vascolare notevole. Nelle ossa lunghe si distinguono epifisi piene di osso spugnoso e diafisi di osso compatto; nelle ossa piatte si osservano tavolati interni ed esterni. L’unità morfologica funzionale dell’osso compatto è l’osteone, intorno al quale ruotano le lamelle e i canalicoli contenenti i capillari; il numero di lamelle che circonda un canale di Havers può variare da 4 a 20. I canali di Havers comunicano tra loro tramite canalicoli che si trovano trasversalmente o obliquamente rispetto all’asse; l’organizzazione lamellare produce una differenza ottica quando osservata al microscopio a luce polarizzata, con strie luminose e scure alternate.
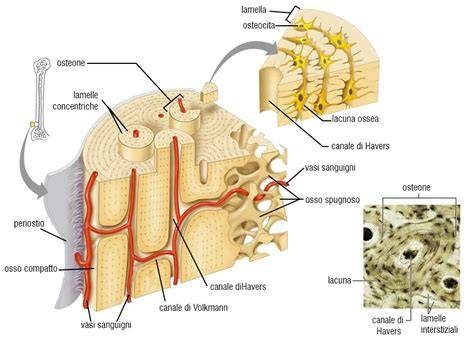
Istologia 28 - Osso - Organizzazione
Il tessuto osseo è rappresentato da tre tipi cellulari principali derivanti dalla stessa cellula progenitrice: osteoblasti, osteociti, osteoclasti. Gli osteoblasti sintetizzano la sostanza intercellulare organica e intervengono nei processi di mineralizzazione; gli osteociti sono gli osteoblasti imprigionati nella matrice calcifica che hanno la funzione di mantenere l’omeostasi del calcio; gli osteoclasti, infine, sono responsabili del riassorbimento osseo massivo. La lamellae e l’organizzazione degli osteoni descrivono la forte resistenza meccanica del tessuto osseo, che è in grado di sopportare tensioni, compressioni e sollecitazioni meccaniche. L’osso è un tessuto vitale, non inerte, e la matrice organica è composta principalmente da collagene di tipo I, proteoglicani, glicoproteine e proteine non collagene legate all’omeostasi del calcio. La regione endostea e il periostio rappresentano importanti compartimenti per la presenza delle cellule staminali mesenchimali capaci di differenziarsi in osteoblasti. L’osso è sottoposto a rimodellamento continuo, partecipando attivamente al mantenimento della calibrazione mineralogica e strutturale del corpo.
tags: #matrice #interstiziale #tessuto #osseo