Sono costituite soprattutto dalle mucine (mucoglicoproteine), proteine ad alto peso molecolare e a elevato contenuto di carboidrati (>80%). Altre componenti secretive del muco sono rappresentate dalle immunoglobuline A (IgA) secretorie, che servono a proteggere le superfici mucose esterne. La funzione principale del muco è quella di mantenere in condizioni ottimali le vie aeree. E lo fa in tanti modi: anzitutto agisce da ostacolo fisico e biologico, formando un film mucoso che rappresenta una efficiente barriera all’attraversamento delle sostanze inalate con la respirazione.
Numerosi studi sperimentali hanno evidenziato che, in assenza di muco, le vie respiratorie si modificano profondamente, provocando, in alcune occasioni, consistenti danni alle strutture anatomiche del polmone. Inoltre svolge un importante compito di filtro e di diluizione: sono tanti i gas irritanti o tossici per le vie respiratorie sottoposti a un processo di filtrazione e diluizione attraverso la superficie mucosa delle vie aeree. Serve anche a rimuovere particelle, pulviscolo e agenti biologici.
Ogni giorno un individuo normale respira particelle di natura estremamente diversa come sostanze vegetali (spore e pollini), batteri e virus, fumi contenenti polveri di derivazione dalla combustione di carbone e tabacco, e altre ancora. Con questo termine si intende il meccanismo di depurazione rapida del muco trocheo-bronchiale che si realizza attraverso il movimento coordinato delle ciglia vibratili e facilitato dalle secrezioni di muco. La deposizione e l'eliminazione delle particelle inalate avviene in modi e tempi differenti nei diversi tratti dell’apparato respiratorio: per esempio, c’è una significativa differenza tra la regione nasale anteriore (che non presenta epitelio ciliato) e quella posteriore (che invece ne è provvista).
La depurazione meccanica delle vie aeree dipende dall’attività ciliare, elemento motore del drenaggio. Tosse produttiva e catarro: quando compaiono questi sintomi, tipici dei malanni invernali, oltre all’intervento terapeutico che punta a risolvere le cause (antibiotici) occorre quindi intervenire direttamente anche sul muco stesso al fine di rendere più facile la clearance e, di conseguenza, l’espettorazione. A questo scopo servono i farmaci chiamati mucolitici. Tra i mucolitici un posto di spicco spetta al sobrerolo che, dalla sua commercializzazione (1970) a oggi, ha rappresentato e rappresenta uno dei capisaldi della classe dei farmaci mucoattivi per la sua provata efficacia e per l’ottima tollerabilità anche in una fascia di età più delicata quale è quella pediatrica.
Attività ciliare e muco bronchiale costituiscono un'unità funzionale detta clearance muco-ciliare che contribuisce alle difese dell'apparato respiratorio in quanto meccanismo responsabile del normale trasporto del muco e della conseguente eliminazione dalle vie respiratorie di particelle di polvere, cellule morte, batteri e virus inalati ed in esso inglobati e quant'altro possa danneggiare l'apparato respiratorio. Condizioni essenziali per un'efficace clearance muco-ciliare sono la composizione ottimale del muco (glicoproteine, proteoglicani e lipidi) ed una valida attività ciliare. Ciascuna cellula ciliata presenta sulla sua superficie apicale circa 200-250 ciglia, il cui diametro è di circa 250 nm. La lunghezza delle ciglia varia da 5 a 8 μm riducendosi man mano che si procede verso la periferia dell'albero bronchiale.
Fino a pochi anni fa si è ritenuto che il battito ciliare di norma fosse asimmetrico e caratterizzato da un movimento in avanti su un piano verticale, relativamente rigido, capace di produrre uno spostamento di muco, seguito da un movimento di ritorno con una flessione su un piano verticale ed orizzontale che non riporta il muco all'indietro. I microtubuli sono lunghi tubi cavi di natura proteica del diametro esterno di 25 nm. Sono formati da dimeri della tubulina, polipeptide presente in forma di subunità globulari (α e β), ciascuna composta da circa 450 aminoacidi. I dimeri di tubulina (α e β) allineati in successione formano dei protofilamenti i quali si affiancano e si dispongono intorno ad una cavità centrale dando origine ai microtubuli.
Nei protofilamenti i dimeri α e β sono sfalsati tra loro in modo che la tubulina α di un dimero è in contatto con la tubulina β di quello vicino. Ogni coppia periferica di microtubuli è costituita da una subfibra A e da una subfibra B. La subfibra A è un microtubulo completo che in sezione trasversale è formato da 13 protofilamenti, la subfibra B è un microtubulo incompleto ed è formato da 11 protofilamenti. Il corpuscolo basale è una struttura cilindrica posta nella porzione apicale del citoplasma della cellula ciliata che contiene un anello di 9 triplette di microtubuli (A,B,C) e ogni tripletta contiene un microtubulo completo (A) fuso con altri due incompleti (B e C).
I microtubuli periferici dell'assonema, si continuano in quelli del corpuscolo basale e a questo livello a ciascuna coppia si aggiunge un terzo microtubolo incompleto, mentre si ha l'arresto della coppia centrale 1µ sopra la superficie cellulare. Come nell'assonema, anche nel corpuscolo basale esistono legami proteici di stabilizzazione, in particolare tra la subfibra A di una tripletta e la subfibra C di quella vicina. I microtubuli che compongono l'assonema vengono stabilizzati da proteine (MAPs: microtubule associated proteins), la più conosciuta delle quali è la dineina. Le molecole di dineina sono organizzate a formare coppie di bracci, interno ed esterno, che in senso antiorario, se osservati dalla base del ciglio, sporgono dalla subfibra A di una coppia alla subfibra B della coppia adiacente a intervalli regolari di 24 nm.
Nell'assonema la dineina costituisce un grande complesso macromolecolare composto da 9-12 subunità di dimensioni diverse. Il braccio esterno, correlato con la frequenza del battito, è formato da 2 subunità α e β, catene pesanti (450.000-400.000 D) che possiedono attività ATPasica e formano le teste globulari del complesso, da 2 o più catene intermedie e da 4-8 subunità più piccole, le catene leggere che, determinano l'ancoraggio del complesso dineinico alla superficie del microtubulo della subfibra A. Altre proteine accessorie sono la tectina simile ai filamenti intermedi, di 2-3 nm. di diametro che scorre internamente ai microtubuli tra le molecole di tubulina e sembra che contribuisca a formare la parete condivisa tra le subfibre A e B stabilizzandone la struttura; la nexina che, a intervalli di 86 nm, forma legami dalla subfibra A alla subfibra B delle coppie periferiche di microtubuli, simili a fasce intorno all'intero assonema paragonabili ai cerchi di un barile; i raggi o razze o ponti radiali che sporgono da ogni coppia con una periodicità di 29 nm. e terminano con la parte globulare vicino alla guaina interna, connettendo quindi ogni coppia periferica a quella centrale ed infine la guaina interna formata da sottili bracci proteici, le proiezioni, che sporgono con una periodicità di 14 nm dal paio di tubuli centrali e sono incurvati intorno ad essi quasi a formare un anello.
Si è dimostrato sperimentalmente che il movimento ciliare non dipende dalla presenza del corpuscolo basale, né da quella della membrana plasmatica poiché l'assonema isolato è in grado di compiere movimenti di flessione se immerso in una soluzione salina contenente ATP e ioni magnesio oppure calcio. Inoltre esponendo assonemi isolati all'azione di enzimi proteolitici che distruggono nexina e ponti radiali, ma lasciano intatti microtubuli e dineina, in presenza di ATP (anche 10 µM) si osserva un allungamento dell'assonema fino a 9 volte la lunghezza iniziale. Sicuramente artefici del meccanismo di scorrimento sono quindi i bracci di dineina: sperimentalmente nell'assonema nudo la loro assenza provoca l'arresto del movimento. Questo ricompare con l'aggiunta di dineina e ATP. In assenza di ATP, i bracci di dineina non occupano tutto lo spazio presente tra una coppia e quella vicina e sono disposti a formare un angolo retto rispetto ai microtubuli. In presenza di ATP, invece, prendono contatto con la coppia adiacente e modificano il loro orientamento dirigendosi verso il basso in direzione del corpuscolo basale. Poiché la dineina è un' ATPasi, con l'idrolisi dell'ATP ogni braccio di dineina genera una forza che agisce in modo da spostare verso l'apice del ciglio la coppia di microtubuli adiacenti con cui prende contatto. Se tutti i bracci si attivassero nello stesso momento, l'assonema si avvolgerebbe a formare un'elica stretta, per cui è proprio la loro attivazione asincrona a permettere il tipico movimento a frusta del ciglio che è l'unico efficace dal punto di vista fisiologico.
Da studi effettuati su un'alga unicellulare provvista di 2 flagelli (Chlamidomonas) sembra che in condizioni di riposo l'attivazione dei bracci di dineina sia inibita da altre proteine e che il segnale trasmesso dai raggi e dalla guaina interna tolga questa inibizione promuovendo l'attivazione organizzata dei bracci di dineina lungo il flagello.
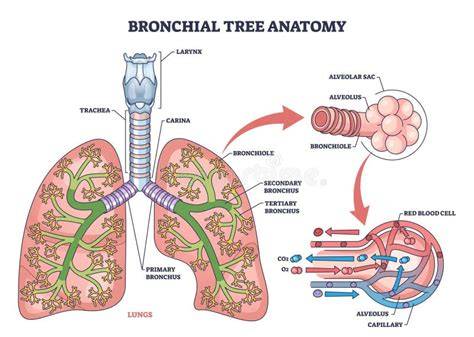
La sezione mostra quindi come la complessa architettura delle ciglia e dei loro componenti permetta la clearance muco-ciliare, essenziale per proteggere le vie aeree da particelle estranee e per mantenere la funzionalità dell'albero bronchiale.
Il resto del testo descrive ulteriori elementi dell’albero bronchiale: dal muco alle vie aeree, fino alla ramificazione dei bronchi e dei bronchioli e alla loro funzione di condotti dell’aria, con una particolare attenzione alla disposizione e alla struttura esterna e interna di bronchi, bronchioli e alveoli.
tags: #ciglia #albero #bronchiale